
Содержание
- Иммуноглобулин D — Immunoglobulin D
- Функция
- Структурное разнообразие
- Метод коэкспрессии
- C# Урок 1 Структура, новый вариант программы и эскейп последовательность
- Активация иммунной системы через IgD
- Ссылки
- Внешние ссылки
- IGD Video — что это в биосе?
- IGD Video — что это в биосе?
- IGD | Конкурс
- Заключение
- Антитела: IgA, IgG, IgD, IgE и IgM — кратко | Иммунология
- Иммуноглобулин D — Immunoglobulin D
- Функция
- Структурное разнообразие
- Метод коэкспрессии
- Активация иммунной системы через IgD
- использованная литература
- внешние ссылки
IgD имеет структурное разнообразие на протяжении всей эволюции позвоночных. потому что это структурно гибкий локус, дополняющий функцию IgM. Одна из важных составляющих IgD состоит в том, что они могут замещать функцию IgM в случае дефектов IgM. В-клетки могут экспрессировать IgD путем альтернативного сплайсинга РНК и рекомбинации с переключением классов. Альтернативный сплайсинг продвигается у всех челюстных позвоночных, но рекомбинация переключения классов только у высших позвоночных и увеличивает диверсификацию IgD. У челюстных рыб структура константной области очень разнообразна с усилением экзонов Cδ. Существуют разные варианты стыковки из-за альтернативных стыков. У человека и приматов IgD имеет три домена Cδ и длинную H-область с аминоконцевой областью, богатой остатками аланина и треонина. С-концевые области богаты остатками лизина, глутамата и аргинина, модифицированными О-гликозилированием для связывания предполагаемого рецептора IgD на поверхности активированных Т-клеток. Человеческий IgD с его H-областью взаимодействует с гепарином и гепарансульфатными протегликанами, экспрессируемыми в базофилах и тучных клетках. IgD мыши имеет более короткую H-область и другой аминокислотный состав, модифицированный N-гликозилированием.
Иммуноглобулин D — Immunoglobulin D
Некоторые антитела образуют полимеры, которые связываются с несколькими молекулами антигена.
Иммуноглобулин D (IgD ) представляет собой антитело изотип, которое составляет около 1% белков в плазматических мембранах незрелых B-лимфоциты, где они обычно коэкспрессируются с другим антителом на клеточной поверхности, называемым IgM. IgD также продуцируется в секретируемой форме, которая обнаруживается в очень малых количествах в сыворотке крови, что составляет 0,25% иммуноглобулинов в сыворотке. относительная молекулярная масса и время полужизни секретируемого IgD составляет 185 кДа и 2,8 дня соответственно. Секретируемый IgD продуцируется в виде мономерного антитела с двумя тяжелыми цепями дельта (δ) класса и двумя легкими цепями Ig .
- 1 Функция
- 2 Структурное разнообразие
- 3 Метод коэкспрессии
- 4 Активация иммунной системы через IgD
- 5 Ссылки
- 6 Внешние ссылки
Функция
Функция IgD была головоломка в иммунологии с момента его открытия в 1964 году. IgD присутствует у видов от хрящевых рыб до человека (за возможным исключением птиц). Это почти повсеместное появление у видов с адаптивной иммунной системой демонстрирует, что IgD может быть столь же древним, как и IgM, и предполагает, что IgD выполняет важные иммунологические функции.
В B-клетках функция IgD состоит в том, чтобы сигнализировать B-клеткам об активации. Будучи активированными, В-клетки готовы принять участие в защите организма как часть иммунной системы. Во время дифференцировки В-клеток IgM является единственным изотипом, экспрессируемым незрелыми В-клетками. IgD начинает экспрессироваться, когда B-клетки покидают костный мозг, чтобы заселить периферические лимфоидные ткани. Когда В-клетка достигает зрелого состояния, она коэкспрессирует как IgM, так и IgD. Исследование, проведенное в 2016 году Убельхартом и его коллегами, показало, что передача сигналов IgD запускается только повторяющимися поливалентными иммуногенами, в то время как IgM может запускаться либо растворимыми мономерными, либо поливалентными иммуногенами. Cδ нокаут мыши (мыши, которые были генетически изменены таким образом, что они не продуцируют IgD) не имеют серьезных внутренних дефектов B-клеток. IgD может играть определенную роль в аллергических реакциях.
Недавно было обнаружено, что IgD связывается с базофилами и тучными клетками и активирует эти клетки, чтобы продуцировать антимикробные факторы, участвующие в респираторных процессах. иммунная защита у человека. Он также стимулирует базофилы к высвобождению гомеостатических факторов В-клеток. Это согласуется с уменьшением количества периферических В-клеток, сниженным уровнем сывороточного IgE и дефектным первичным ответом IgG1 у мышей с нокаутом IgD.
Структурное разнообразие
IgD имеет структурное разнообразие на протяжении всей эволюции позвоночных. потому что это структурно гибкий локус, дополняющий функцию IgM. Одна из важных составляющих IgD состоит в том, что они могут замещать функцию IgM в случае дефектов IgM. В-клетки могут экспрессировать IgD путем альтернативного сплайсинга РНК и рекомбинации с переключением классов. Альтернативный сплайсинг продвигается у всех челюстных позвоночных, но рекомбинация переключения классов только у высших позвоночных и увеличивает диверсификацию IgD. У челюстных рыб структура константной области очень разнообразна с усилением экзонов Cδ. Существуют разные варианты стыковки из-за альтернативных стыков. У человека и приматов IgD имеет три домена Cδ и длинную H-область с аминоконцевой областью, богатой остатками аланина и треонина. С-концевые области богаты остатками лизина, глутамата и аргинина, модифицированными О-гликозилированием для связывания предполагаемого рецептора IgD на поверхности активированных Т-клеток. Человеческий IgD с его H-областью взаимодействует с гепарином и гепарансульфатными протегликанами, экспрессируемыми в базофилах и тучных клетках. IgD мыши имеет более короткую H-область и другой аминокислотный состав, модифицированный N-гликозилированием.
Метод коэкспрессии
В локусе тяжелых цепей человека 3 ‘кассеты VDJ представляет собой серию C (для константных) генов, каждый из которых дает Ig изотип. Ген Cμ (IgM) расположен на 3 ‘и наиболее близок к кассете V-D-J, при этом ген Cδ находится на 3’ от Cμ.
Первичный транскрипт мРНК будет содержать транскрибированную кассету V-D-J и гены Cμ и Cδ с интронами между ними.
Затем может произойти альтернативный сплайсинг, в результате чего на функциональной мРНК (μ-мРНК и δ-мРНК соответственно) появится выборка Cμ или Cδ. Считается, что альтернативный сплайсинг возможен благодаря двум сайтам полиаденилирования, один из которых находится между Cμ и Cδ, а другой 3 ‘Cδ (полиаденилирование в последнем сайте может вызвать сплайсинг Cμ вместе с интрон). Точный механизм выбора сайта полиаденилирования остается неясным.
Полученная функциональная мРНК будет иметь смежные области V-D-J и C, и ее трансляция будет генерировать либо тяжелую цепь μ, либо тяжелую цепь δ. Затем тяжелые цепи соединяются с легкими цепями κ или λ с образованием конечного антитела IgM или IgD.
Белок 318 цинкового пальца (ZNF318 ) играет роль в стимулировании экспрессии IgD и контроле альтернативного сплайсинга длинной пре-мРНК. В незрелых В-клетках, которые в основном экспрессируют μ-транскрипт, нет экспрессии ZFP318, но в зрелых В-клетках с двойной экспрессией IgM и IgD создаются как δ-, так и μ-транскрипт, и экспрессируется ZFP318. Enders et al. (2014) обнаружили у мышей, что нулевые мутации в ZFP318 не приводят к экспрессии IgD.
C# Урок 1 Структура, новый вариант программы и эскейп последовательность
Активация иммунной системы через IgD
Адаптивные и врожденные иммунные ответы могут быть активированы через заякоренный в мембране IgD, который функционирует как часть комплексов B-клеточного рецептора (BCR) или секретируемой формы IgD, который связывается с моноцитами, тучными клетками и базофилами соответственно. Исследование, проведенное в 2010 г. Nguyen TG et al., Противоречит традиционной парадигме, согласно которой активация иммунной системы может потенциально усугубить аутоиммунные заболевания и аллергическое воспаление кожи. впервые продемонстрировал, что лечение моноклональным анти-IgD-антителом может ослабить тяжесть заболевания на животной модели артрита, индуцированного коллагеном. Этот новый терапевтический эффект лечения антителами против IgD был позже подтвержден на мышиных моделях приобретенного буллезного эпидермолиза и хронической контактной гиперчувствительности.
Ссылки
- ^Rogentine GN, Rowe DS, Bradley J, Waldmann TA, Fahey JL. (1966). «Метаболизм человеческого иммуноглобулина D (IgD)». J. Clin. Вкладывать деньги. 45 (9): 1467–78. doi : 10.1172 / JCI105454. PMC292826. PMID5919348.
- ^Охта, Юко; Мартин Флайник (11 июля 2006 г.). «IgD, как и IgM, является классом первичных иммуноглобулинов, сохраняющимся у большинства позвоночных с челюстями». Труды Национальной академии наук. 103 (28): 10723–10728. Bibcode : 2006PNAS..10310723O. doi : 10.1073 / pnas.0601407103. PMC1636022. PMID16818885.
- ^ Übelhart, R; Обнять, E; Бах, депутат; Wossning, T; Dühren-von Minden, M; Рог, AH; Циантулас, Д; Кометани, К; Куросаки, Т; Binder, CJ; Sticht, H; Ничке, Л; Reth, M; Джумаа, Х (2015). «Отзывчивость В-клеток регулируется шарнирной областью IgD». Nat Immunol. 16 (5): 534–43. doi : 10.1038 / ni.3141. PMID25848865.
- ^Эдхольм Э.С., Бенгтен Э., Уилсон М (2011). «Понимание функции IgD». Dev. Комп. Иммунол. 35 (12): 1309–16. doi : 10.1016 / j.dci.2011.03.002. PMID21414345.
- ^Nitschke L, Kosco MH, Köhler G, Lamers MC (1993). «Мыши с дефицитом иммуноглобулина D могут вызывать нормальные иммунные ответы на тимус-независимые и -зависимые антигены». Proc. Natl. Акад. Sci. США 90 (5): 1887–91. Bibcode : 1993PNAS. 90.1887N. doi : 10.1073 / pnas.90.5.1887. PMC45985. PMID8446604.
- ^ Чен, Кан; Сюй, Вэйфэн; Уилсон, Мелани; Он, Бинг; Миллер, Норман В; Бенгтен, Ева; Эдхольм, Ева-Стина; Сантини, Пол А; и другие. (2009). «Иммуноглобулин D усиливает иммунный надзор, активируя противомикробные, провоспалительные и B-клеточные программы в базофилах». Иммунология природы. 10 (8): 889–898. doi : 10.1038 / ni.1748. PMC2785232. PMID19561614.
- ^Бенгтен, Ева; Quiniou, Sylvie M.-A.; Stuge, Tor B.; Катагири, Такаюки; Миллер, Норман У.; Клем, Л. Уильям; Уорр, Грегори У.; Уилсон, Мелани (1 Сентября 2002). «Локус IgH канального сома, Ictalurus punctatus, содержит несколько последовательностей генов постоянной области: разные гены кодируют тяжелые цепи мембраны и секретируемый IgD». Журнал иммунологии. 169 (5): 2488–2497. doi : 10.4049 / jimmunol.169.5.2488. ISSN0022-1767. PMID12193718.
- ^ Preud’homme, Жан-Луи; Пети, Изабель; Барра, Энн; Морель, Жан-Клод Лекрон, Франк; Лельевр, Эрик (октябрь 2000 г.). «Структурные и функциональные свойства мембран и секретируемых IgD». Молекулярная иммунология. 37 (15): 871–887. doi : 10.1016 / s0161-5890 (01) 00006-2. ISSN0161-5890. PMID11282392.
- ^Ohta, Y.; Флайник, М. (3 Июля 2006). «IgD, как и IgM, является классом первичных иммуноглобулинов, сохраняющимся у большинства позвоночных с челюстями». Труды Национальной академии наук. 103 (28): 10723–10728. Bibcode : 2006PNAS..10310723O. doi : 10.1073 / pnas.0601407103. ISSN0027-8424. PMC1636022. PMID16818885.
- ^«Иммуноглобулин, переключение изотипа». Ссылка Springer. SpringerReference. Springer-Verlag. 2011. doi : 10.1007 / springerreference_38701.
- ^Чен, Кан; Черутти, Андреа (19 августа 2010 г.). «Новое понимание загадки иммуноглобулина D». Иммунологические обзоры. 237 (1): 160–179. doi : 10.1111 / j.1600-065x.2010.00929.x. ISSN0105-2896. PMC3048779. PMID20727035.
- ^Iwase, H.; Tanaka, A.; Hiki, Y.; Кокубо, Т.; Исии-Каракаса, I.; Кобаяши, Ю.; Хотта, К. (1 Июля 1996). «Изобилие Gal 1,3GalNAc в О-связанном олигосахариде на шарнирной области полимеризованного IgA1 и термоагрегированного IgA1 из нормальной сыворотки человека». Журнал биохимии. 120 (1): 92–97. doi : 10.1093 / oxfordjournals.jbchem.a021398. ISSN0021-924X. PMID8864849.
- ^ Swenson, Christina D.; Патель, Такор; Parekh, Raj B.; Тамма, С. М. Лакшми; Coico, Ричард Ф.; Торбек, Дж. Жанетт; Амин, Ашок Р. (август 1998 г.). «Рецепторы IgD Т-клеток человека реагируют с О-гликанами как на IgD, так и на IgA1 человека». Европейский журнал иммунологии. 28 (8): 2366–2372. doi : 10.1002 / (sici) 1521-4141 (199808) 28:08 3.0.co; 2-d. ISSN0014-2980. PMID9710214.
- ^ Мерфи, К. Уивер, С (2016). Иммунобиология Джейнвей. Нью-Йорк, Нью-Йорк: Наука Гарленд / Тейлор и Фрэнсис. п. 195. ISBN 9780815345053 .
- ^Эндерс, А., Шорт, А., Миосге, Л., Бергманн, Х., Сонтани, Ю., Бертрам, Э., Уиттл, Б., Балакишнан, Б., Йошида, К., Шоллема, Г., Филд, М., Эндрюс, Т., Хагивара, Х. и Гуднау, К. (2014). «Белок цинкового пальца ZFP318 необходим для экспрессии IgD, альтернативно сплайсированного продукта Igh, производимого зрелыми В-лимфоцитами». Труды Национальной академии наук. 111 (12): 4513–4518. Bibcode : 2014PNAS..111.4513E. doi : 10.1073 / pnas.1402739111. PMC3970522. PMID24616512. CS1 maint: использует параметр авторов (ссылка )
- ^ Nguyen, Tue G.; Little, Christopher B.; Yenson, Vanessa M.; Джексон, Кристофер Дж.; Маккракен, Шэрон А.; Предупреждение, Джулия; Стивенс, Вероника; Галерея, Эйлин Г.; Моррис, Джонатан М. (2010). «Анти-IgD-антитело ослабляет индуцированный коллагеном артрит путем избирательного истощения зрелого B -клетки и повышение иммунной толерантности «. Journal of Autoimmunity. 35 (1): 86–97. doi : 10.1016 / j.jaut.2010.03.003. ISSN0896-8411. PMID20456921.
- ^Чжай, Гуань-Тин; Ван, Хай; Ли, Цзин-Сянь; Цао, Ping-Ping; Jiang, Wen-Xiu; Song, Jia; Yao, Yin; Wang, Zhi-Chao; Wang, Zhe-Zheng (2018). «IgD-активированные тучные клетки индуцируют синтез IgE в B-клетках в носовой полости. полипы ». Журнал аллергии и клинической иммунологии. 142 (5): 1489–1499.e23. doi : 10.1016 / j.jaci.2018.07.025. ISSN0091-6749. PMID30102935.
- ^Шан, Меймей; Каррильо, Хорхе; Йесте, Ада; Гутцайт, Синди; Сегура-Гарсон, Даниэль; Уолланд, А. Купер; Пибус, Марк; Grasset, Emilie K.; Йейзер, Джон Р. (2018). «Секретированный IgD усиливает гуморальные реакции клеток Т-хелпера 2 путем связывания базофилов через галектин-9 и CD44». Иммунитет. 49 (4): 709–724.e8. doi : 10.1016 / j.immuni.2018.08.013. ISSN1074-7613. PMC6366614. PMID30291028.
- ^Кулкарни, Упасана; Карстен, Кристиан М.; Колер, Томас; Хаммершмидт, Свен; Боммерт, Курт; Тибурзи, Бенджамин; Мэн, Линчжан; Тиме, Лара; Рекке, Андреас (2016). «IL-10 опосредует иммунодефицит, связанный с плазмоцитозом, ингибируя опосредованную комплементом миграцию нейтрофилов». Журнал аллергии и клинической иммунологии. 137 (5): 1487–1497.e6. doi : 10.1016 / j.jaci.2015.10.018. ISSN0091-6749. PMID26653800.
- ^Нгуен, Вт Дж. (2018). «Иммуномодуляция через рецептор В-клеток IgD подавляет аллергическое воспаление кожи в экспериментальных моделях контактной гиперчувствительности, несмотря на гуморальный ответ, благоприятствующий Th2». Письма иммунологии. 203 : 29–39. doi : 10.1016 / j.imlet.2018.09.008. ISSN0165-2478. PMID30218740.
Внешние ссылки
- Immunoglobulin + D в Национальной медицинской библиотеке США Медицинские предметные рубрики (MeSH)
IGD Video — что это в биосе?
Приветствую. Данная заметка расскажет об одной функции, которую вы можете заметить в BIOS персонального компьютера. Сразу предупреждаем — просто, без специальных знаний, никакие настройки в BIOS изменять нельзя!
IGD Video — что это в биосе?
Позволяет выбрать в качестве основной видеокарты — графическое ядро процессора (iGPU).
Простыми словами — основным видеоадаптером будет встроенное видеоядро процессора, которое содержат большинство моделей процессоров AMD/Intel.
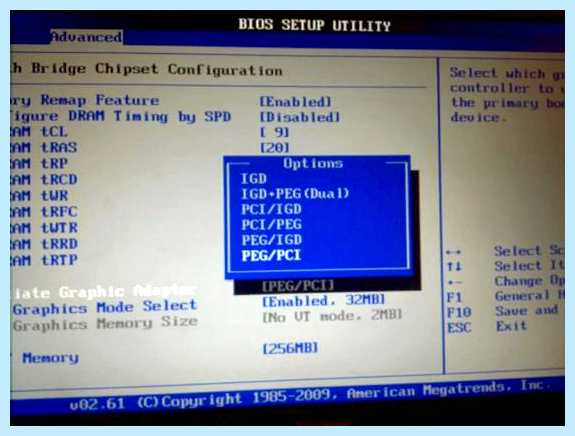
Данное название может являться названием пункта меню опции Initiate Graphic Adapter. Настройка позволяет указать какое графическое устройство будет основным, то есть на какую сразу будет вывод изображения после запуска ПК. В этой опции выбирается порядок, например:
IGD | Конкурс
- PEG/PCI — основная карта будет PEG, это которая подключена к шине PCI Express 16x.
- PCI/PEG — первая карта, подключенная к шине PCI (такие видеокарты на самом деле редкость).
- IGD — использовать только встроенное графическое ядро, кроме этого может могут быть значения IGD/PCI, IGD/PEG, соответственно здесь также — основным графическим ядром будет встроенное видеоядро, потом уже внешняя видеокарта.
Значения/названия опций зависят от модели материнской платы, года выпуска.
Пункт IGD Video также может содержать функция Initial Display Output. Иногда вместо IGD используется термин Onboard.
Другими словами, важно понимать следующее:
- IGD Video — буквально означает встроенная видеокарта процессора (CPU).
- GPU — обычный внешний графический адаптер, для установки используется разьем PCI-E. Иногда такая карта еще называется dGPU (d — discrete).
- iGPU — встроенное графическое ядро процессора.
Заключение
- IGD Video — при выборе пункта основной видеокартой станет встроенное видеоядро в процессоре.
Антитела: IgA, IgG, IgD, IgE и IgM — кратко | Иммунология
Иммуноглобулин D — Immunoglobulin D
Иммуноглобулин D ( IgD ) представляет собой изотип антитела, который составляет около 1% белков в плазматических мембранах незрелых В-лимфоцитов, где он обычно коэкспрессируется с другим антителом на клеточной поверхности, называемым IgM . IgD также продуцируется в секретируемой форме, которая обнаруживается в очень малых количествах в сыворотке крови , что составляет 0,25% иммуноглобулинов в сыворотке. Относительная молекулярная масса и период полураспада секретируемого IgD составляет 185 кДа и 2,8 дней, соответственно. Секретируемый IgD продуцируется в виде мономерного антитела с двумя тяжелыми цепями дельта (δ) класса и двумя легкими цепями Ig .
- 1 Функция
- 2 Структурное разнообразие
- 3 Метод коэкспрессии
- 4 Активация иммунной системы через IgD
- 5 ссылки
- 6 Внешние ссылки
Функция
Функция IgD была загадкой в иммунологии с момента его открытия в 1964 году. IgD присутствует у видов от хрящевых рыб до человека (за возможным исключением птиц). Это почти повсеместное появление у видов с адаптивной иммунной системой демонстрирует, что IgD может быть столь же древним, как и IgM, и предполагает, что IgD выполняет важные иммунологические функции.
В B-клетках функция IgD состоит в том, чтобы сигнализировать об активации B-клеток. Будучи активированными, В-клетки готовы участвовать в защите организма как часть иммунной системы. Во время дифференцировки В-клеток IgM является единственным изотипом, экспрессируемым незрелыми В-клетками. IgD начинает экспрессироваться, когда B-клетки покидают костный мозг, чтобы заселить периферические лимфоидные ткани. Когда В-клетка достигает своего зрелого состояния, она коэкспрессирует как IgM, так и IgD. Исследование, проведенное в 2016 году Юбельхартом и его коллегами, показало, что передача сигналов IgD запускается только повторяющимися поливалентными иммуногенами, в то время как IgM может запускаться либо растворимыми мономерными, либо поливалентными иммуногенами. Сд нокаут мышей (мышей , которые были генетически изменены таким образом , что они не производят IgD) не имеют каких — либо серьезных В — клеточные внутренние дефекты. IgD может играть определенную роль в аллергических реакциях .
Недавно было обнаружено, что IgD связывается с базофилами и тучными клетками и активирует эти клетки для производства антимикробных факторов, которые участвуют в респираторной иммунной защите у людей. Он также стимулирует базофилы к высвобождению гомеостатических факторов В-клеток. Это согласуется с уменьшением количества периферических В-клеток, сниженным уровнем сывороточного IgE и дефектным первичным ответом IgG1 у мышей с нокаутом IgD.
Структурное разнообразие
IgD имеет структурное разнообразие на протяжении всей эволюции позвоночных, потому что это структурно гибкий локус, дополняющий функцию IgM. Важность IgD заключается в том, что он может замещать функцию IgM в случае дефектов IgM. В-клетки могут экспрессировать IgD путем альтернативного сплайсинга РНК и рекомбинации с переключением классов. Альтернативный сплайсинг продвигается у всех челюстных позвоночных, но рекомбинация переключения классов только у высших позвоночных и увеличивает диверсификацию IgD. У челюстных рыб структура константной области очень разнообразна с усилением экзонов Cδ. Существуют разные варианты стыковки из-за альтернативных стыков. У человека и приматов IgD имеет три домена Cδ и длинную H-область с аминоконцевой областью, богатой остатками аланина и треонина. С-концевые области богаты остатками лизина, глутамата и аргинина, модифицированными О-гликозилированием для связывания предполагаемого рецептора IgD на поверхности активированных Т-клеток. Человеческий IgD с его H-областью взаимодействует с гепарином и гепарансульфатными протогликанами, экспрессируемыми в базофилах и тучных клетках. IgD мыши имеет более короткую H-область и другой аминокислотный состав, модифицированный N-гликозилированием.
Метод коэкспрессии
В локусе тяжелых цепей человека 3 ‘ кассеты VDJ представляет собой серию генов C (для констант), каждый из которых соответствует изотипу Ig. Ген Cμ (IgM) расположен на 3 ‘и наиболее близок к кассете VDJ, при этом ген Cδ расположен через 3’ от Cμ.
Первичный транскрипт мРНК будет содержать транскрибируемую кассету VDJ и гены Cμ и Cδ с интронами между ними.
Затем может происходить альтернативный сплайсинг , в результате чего на функциональной мРНК (μ-мРНК и δ-мРНК соответственно) появляется выборка Cμ или Cδ. Считается, что альтернативный сплайсинг возможен благодаря двум сайтам полиаденилирования , один появляется между Cμ и Cδ, а другой 3′-Cδ (полиаденилирование в последнем сайте может вызвать сплайсинг Cμ вместе с интроном). Точный механизм выбора сайта полиаденилирования остается неясным.
Полученная функциональная мРНК будет иметь смежные области VDJ и C, и ее трансляция будет генерировать либо тяжелую цепь μ, либо тяжелую цепь δ. Затем тяжелые цепи соединяются с легкими цепями κ или λ с образованием конечного антитела IgM или IgD.
Белок 318 цинкового пальца ( ZNF318 ) играет роль в стимулировании экспрессии IgD и контролирует альтернативный сплайсинг длинной пре-мРНК. В незрелых В-клетках, которые в основном экспрессируют μ-транскрипт, нет экспрессии ZFP318, но в зрелых В-клетках с двойной экспрессией IgM и IgD создаются как δ-, так и μ-транскрипт, и экспрессируется ZFP318. Enders et al. (2014) обнаружили у мышей, что нулевые мутации в ZFP318 не приводят к экспрессии IgD.
Активация иммунной системы через IgD
Врожденные и адаптивные иммунные ответы могут быть активированы через заякоренный в мембране IgD, который функционирует как часть комплексов B-клеточного рецептора (BCR) или секретируемая форма IgD, которая связывается с моноцитами, тучными клетками и базофилами соответственно. В отличие от традиционной парадигмы о том, что активация иммунной системы может усиливать аутоиммунные заболевания и аллергическое воспаление, исследование 2010 г., проведенное Nguyen TG et al. впервые продемонстрировал, что лечение моноклональным антителом против IgD может уменьшить тяжесть заболевания на животной модели артрита, индуцированного коллагеном. Этот новый терапевтический эффект лечения анти-IgD антителами был позже подтвержден на мышиных моделях приобретенного буллезного эпидермолиза и хронической контактной гиперчувствительности. Исследования показали, что уровни секретируемого lgD обычно повышены у пациентов с анаутоиммунным заболеванием, а недавно было продемонстрировано, что IgD усиливает активацию мононуклеарных клеток периферической крови у пациентов с ревматоидным артритом (РА), что позволяет предположить, что IgD может быть иммунотерапевтическим средством. цель для руководства РА. Активированные иммунные ответы через IgD-BCR и секретируемый IgD могут оказывать подавляющее действие на аутоиммунные заболевания и аллергические воспаления, предполагая потенциальную иммунорегулирующую функцию IgD.
использованная литература
внешние ссылки
- Immunoglobulin + D в Национальных медицинских предметных рубриках США (MeSH)